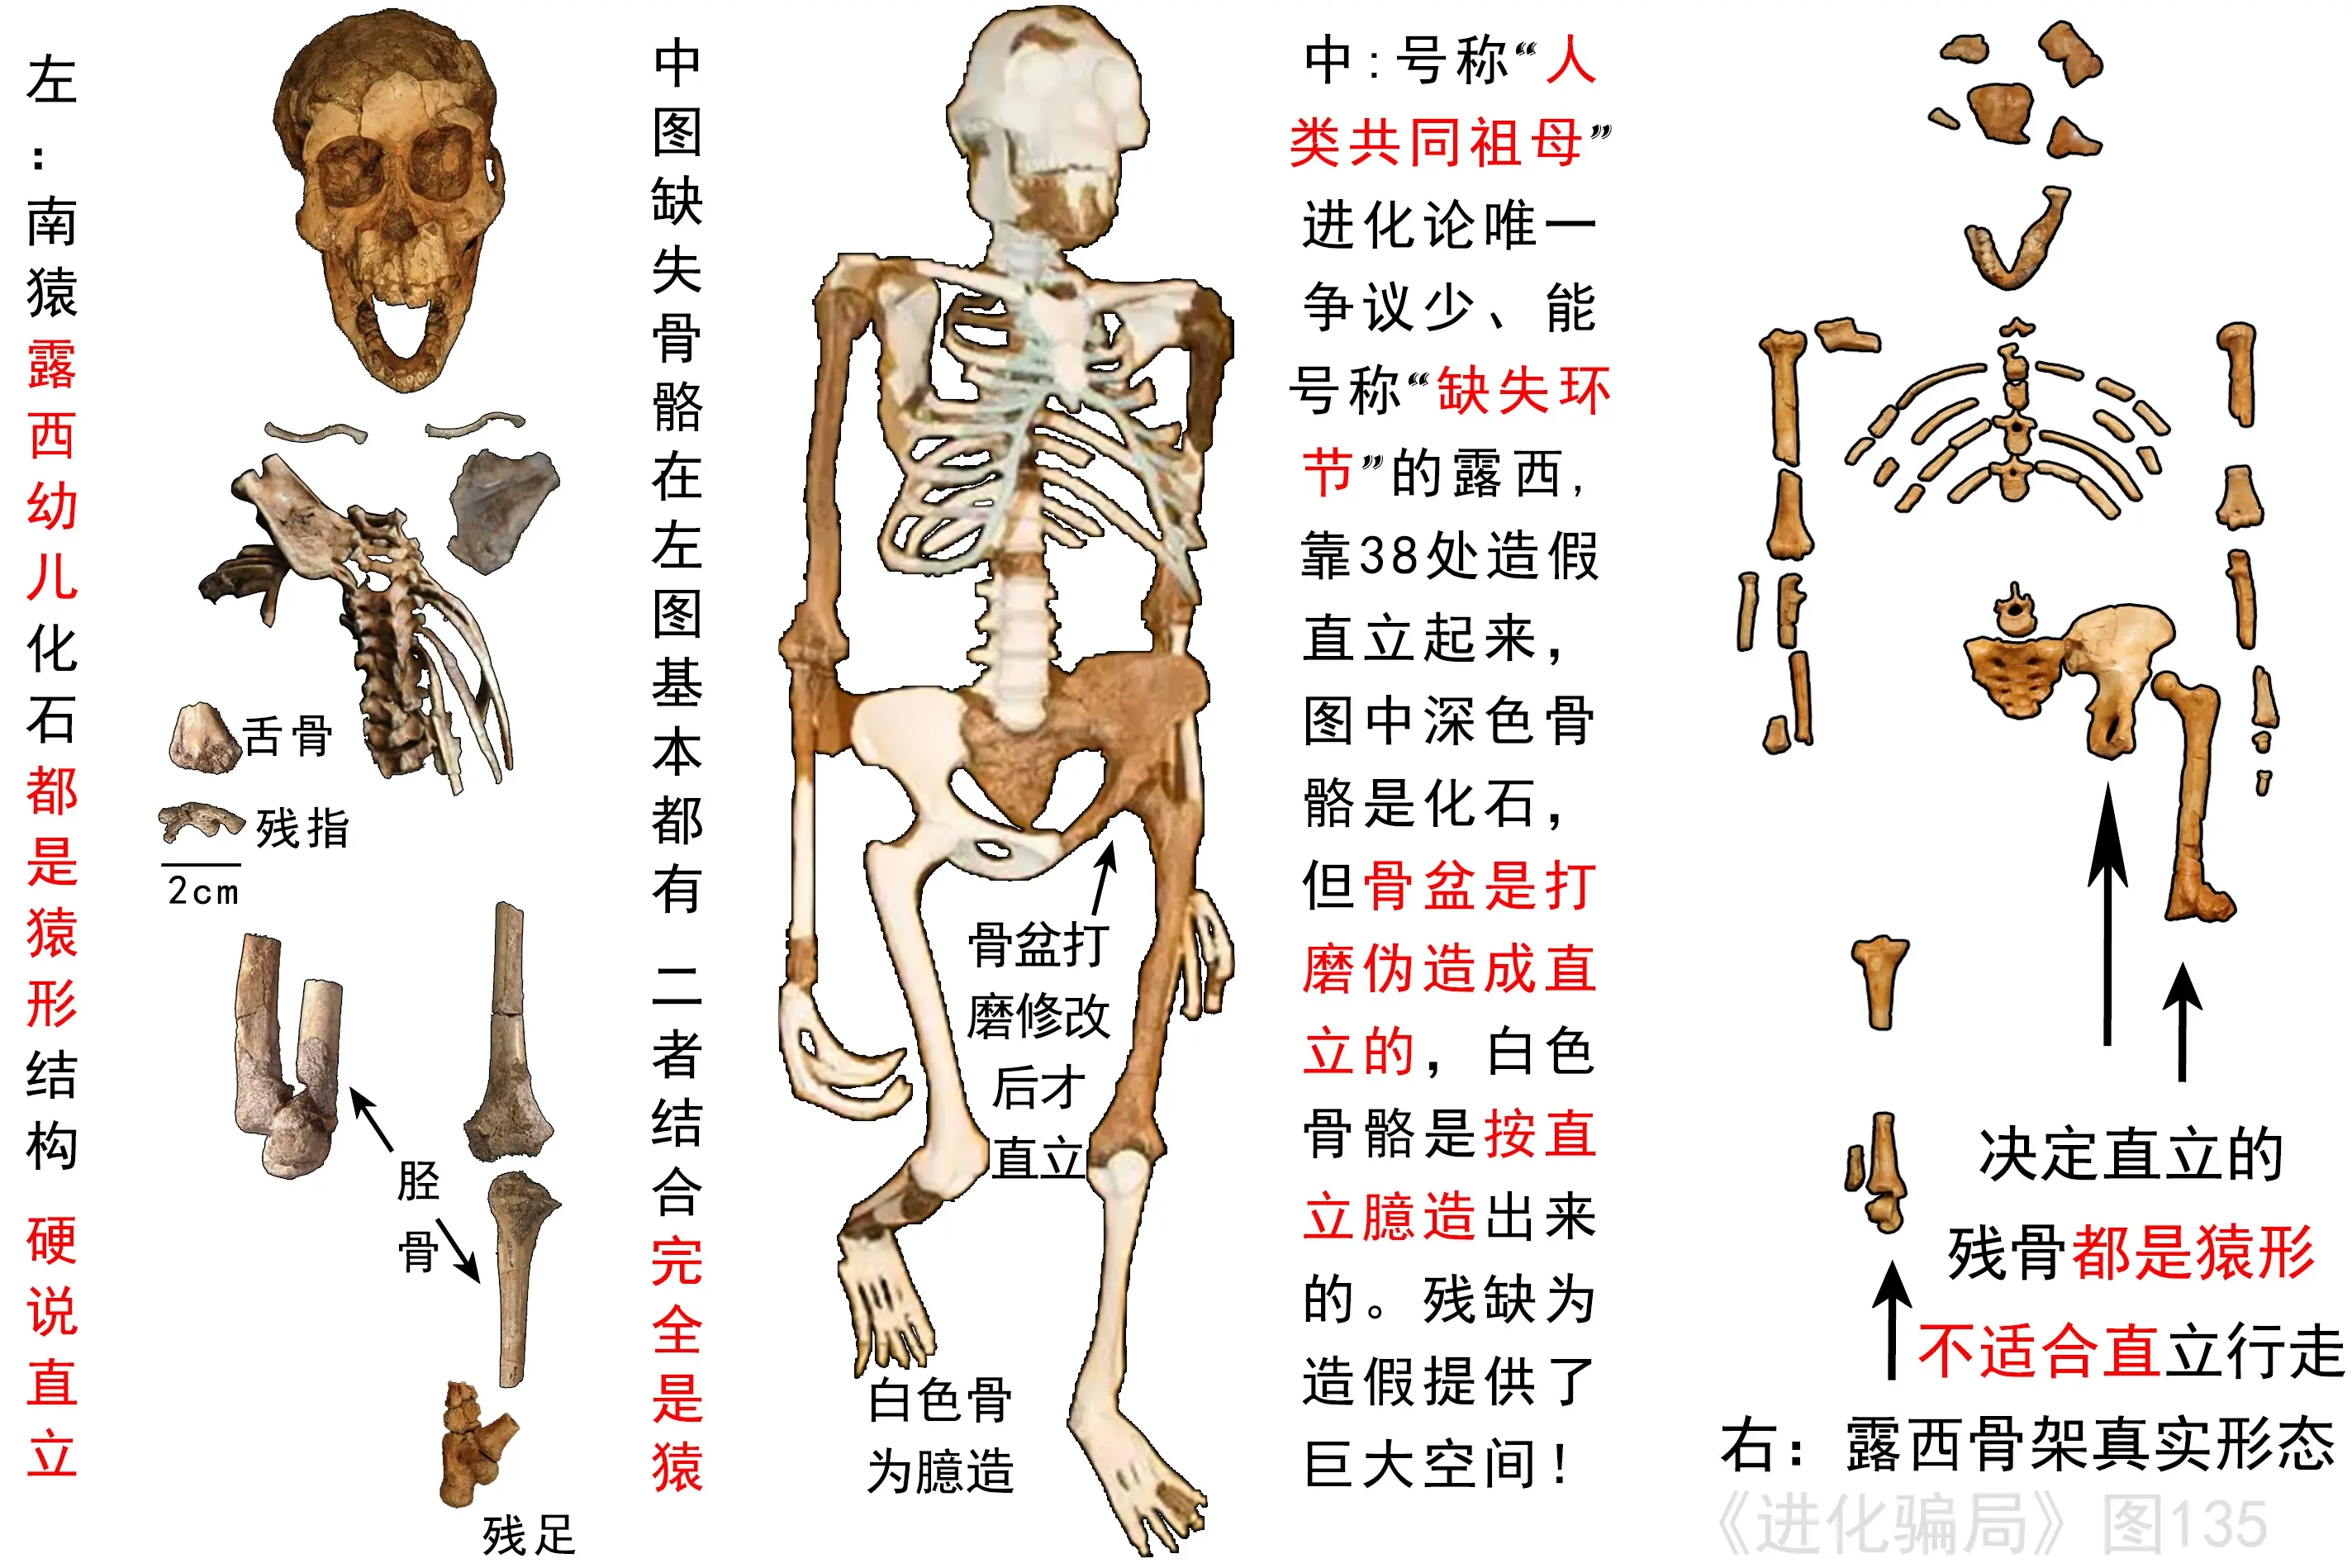
南猿“露西幼儿”残骨化石,处处像猿没人样,强夺“祖先桂冠”,图左参考文献1。(作者提供)作者:中港台时间2026-11-0801:01发表人气38*******
前37篇,我们揭开了“进化论假说”在找证据中的造假内幕:“爪哇猿人”(Java Man)是相距45英尺的“猿头盖骨+人股骨”拼的,“爪哇猿人Ⅱ”是漫山遍野凑的头骨残片;皮尔当“曙光猿人”(Eoanthropus)是人颅骨+猿下颌,欺骗41年才被拆穿;美国“黄昏猿人”(Hesperopithecus)招摇5年,竟是野猪;著名的“北京猿人”头骨,一致的“人为头伤”表明它们是猎物,而朊病毒否定了它们自相残食,只能是被人捕食,不是人祖。
非洲的“人类祖先”化石,第一个南猿漏洞百出,当时就被打回猿形,后来竟被进化论专家群体造假,伪造成直立行走的“人祖”;李基(Louis Leakey)发现的东非(猿)人一度攫取“人祖”桂冠,旋即破灭,后来为其写的《传记》都直言太假,“外行看了也不会上当”;“能人”作为初级“猿人”名噪一时,实践中因太多抵牾,被冷弃为“垃圾堆”(第32章)。
南猿露西被誉为“最伟大的发现”,人类共同祖先——实为造假的峰巅!前面我们揭开了它38项大错,没一点人样。本篇开始侦破“露西幼儿”(Lucy child),破解这个延续造假的伪案。
299.进化又炒新宠,露西幼儿“轰动”
2000年在非洲埃塞俄比亚发现的南猿幼崽化石,2006年以多篇论文“荣登”《自然》[1],在顶级学术期刊上,开启了又一轮进化论的炒作之旅——人类最早的“祖先”又提前了10万年——进化论又来轰动世界了!
上图左边330万岁的“露西幼儿”更完整,而且在砂石里原位埋存,这比地表发现、攒凑的、缺失大半的同种露西,更有说服力。因为必须适应双足直立行走才能称为人,所以也在这上狠“下功夫”。那她到底有多少像人之处呢?
最终的答案竟然是〇!尽管论文中高调宣称:脚和下肢清晰显示了双足直立行走的运动方式[1],但只是停留在口号上,没给出任何实际结构,没有任何像样的证据。论文中有证据的,是它的上肢、肩胛等结构,都是典型的树栖猿。奋力营造“树栖+地面直立行走”的矛盾模式。
300.幼儿错1:标准有假,错上加错
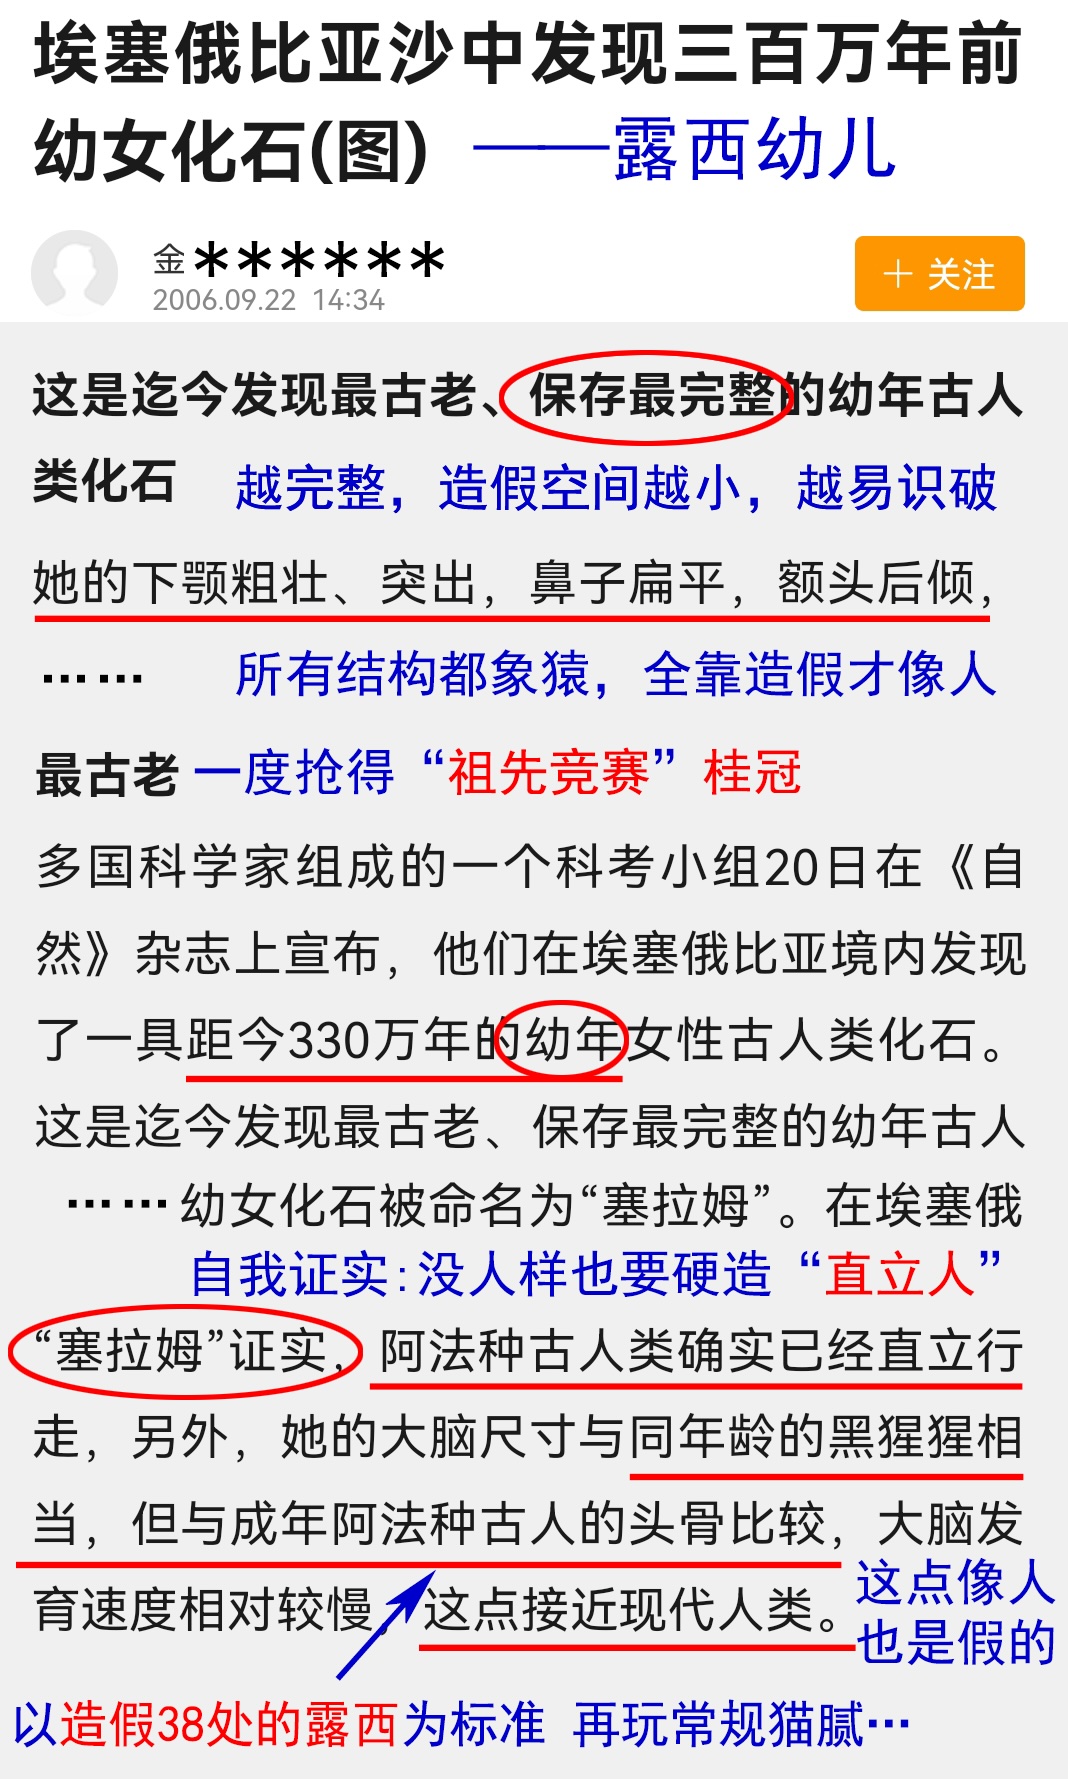
“露西幼儿”(Lucy child)——昵称“塞拉姆”(Selam)的“轰动”炒作。(网络截图)
越完整越难造假,这是进化论面对真实化石的死结。“露西幼儿”完全是猿形结构,当时唯一“像人”的、能影射成直立的特征,就是上面截图中的“大脑发育慢”了——但这不是实际证据,只是进化论的推测,而且,这个推测是以同种南猿的大脑容量为比较的标准,而这个标准,看本文置顶图,南猿露西的头骨绝大部分缺失,白色的头骨是根据进化论想像出来的。
因为“比较的标准”没有可信度,所以,得出的结论“大脑发育缓慢”——这个仅有的像人特征,是错上加错。
301.幼儿错2:大孔数据,一再猫腻
前面多次讲过枕骨大孔,它是直立行走的重要证据之一。人的枕骨大孔在颅骨底面的中央区域,向下开口,垂直连接脊柱,适应直立行走。而动物的枕骨大孔偏向后方,开口向后方倾斜,斜接脊柱,适应四足行走。
第一个南方古猿,是1925年达特(Raymond Dart)发表的汤恩幼崽(Taung child)(6岁)。达特提出了枕骨大孔位置指数,测量结果是:
黑猩猩50.7,
南猿汤恩幼崽60.7,
欧洲人均98.4,
结论是南猿站立的应该比黑猩猩直一些[2]。
但是达特的结论当时就受到了质疑,进化专家指出达特闹了学术笑话,不懂猿幼崽的情况。黑猩猩的幼崽嘴并不突出,颅骨先发育,嘴后发育,所以枕骨大孔会靠前,判断的依据应该是成体,而不是幼崽。
可笑的是,后来的进化论专家一致掩盖上述结论,直接造假,说汤恩幼崽枕骨大孔在中央,和人一样,硬造出南猿直立的证据!
在2006年“露西幼儿”的开山论文中,对枕骨大孔闪烁其词:只是含含糊糊地说“在牙齿年龄可比的范围”里“露西幼儿”的枕骨大孔,比猿更靠前。[1]”具体靠前多少?枕骨大孔指数多少?根本不提了——看下图就知道,这正是进化论专家的猫腻所在!
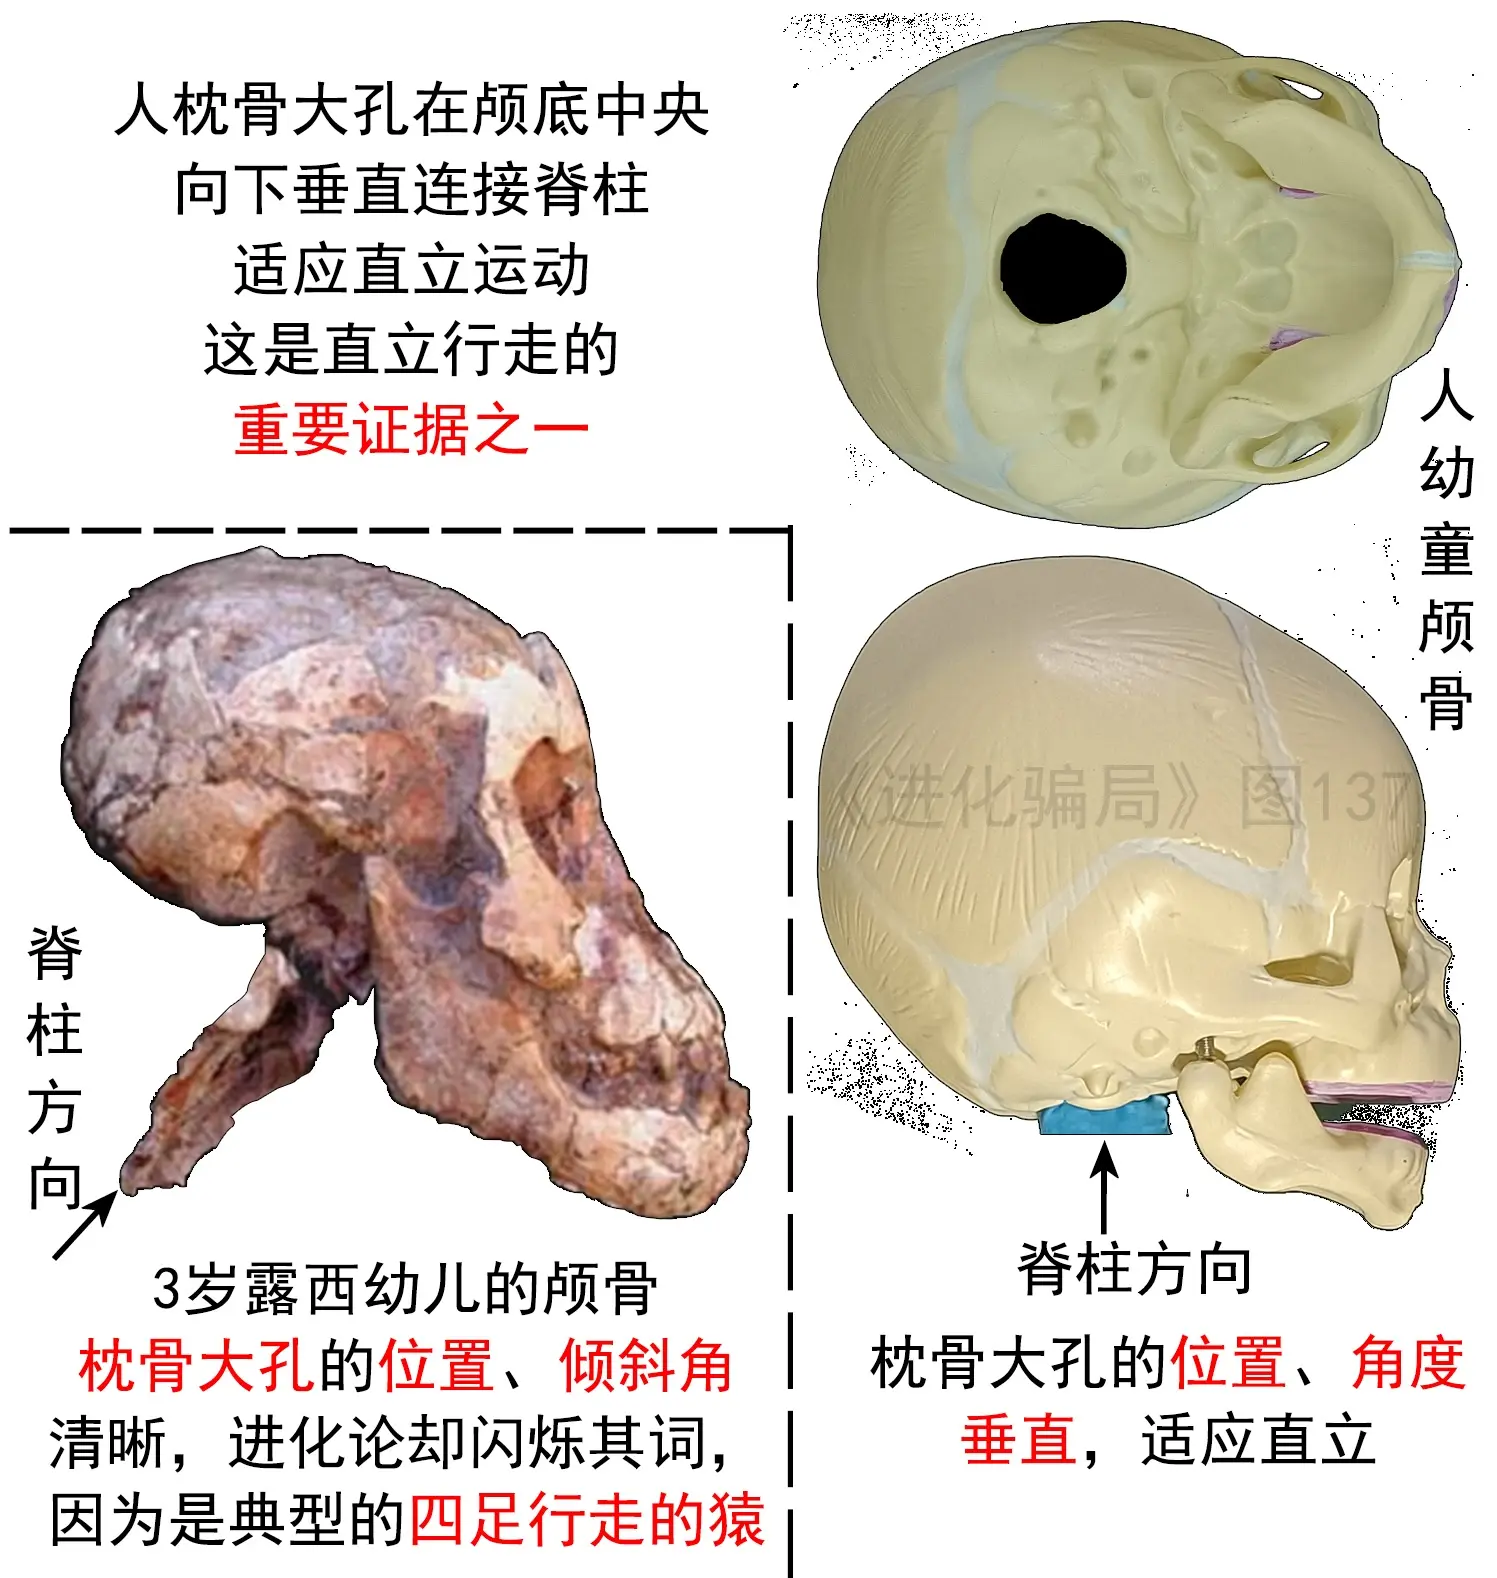
“露西幼儿”谎称直立,隐匿枕骨大孔的关键反证,图左下参考文献1。(作者提供)
没有对比就没有真相:上图南猿幼儿的枕骨大孔再靠前,也无法和人类幼儿相比,更关键的是脊柱的角度,左图是典型的四足行走的兽(脊柱斜向后),和右图直立运动的人(垂直向下)完全不同!
铁证一目了然,所以,进化论才对此遮遮掩掩,蒙混视线。
302.幼儿错3:7证树栖,反说直立
与上面“高调直立行走”不同,2006年同期《自然》上的另一篇论文委婉指出:“露西幼儿”不可能只限于直立行走一种运动方式。仔细研究它的肩胛骨、手、内耳平衡器,这些决定运动方式的结构,都和猿一致,和人不同[3]。
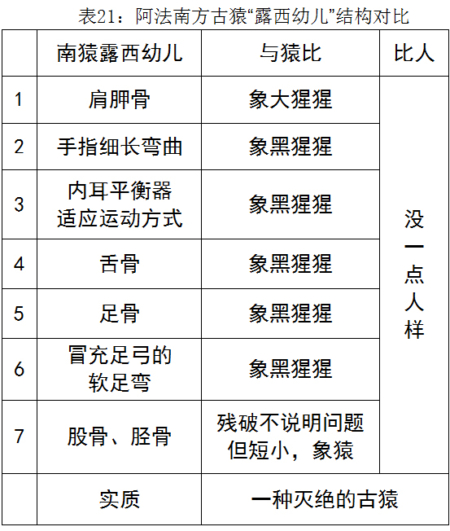
强大、众多到无处不在的树栖猿特征,弱到零证据的人形结构,还怎么硬称:能“双足直立行走”?硬捆绑出树栖和地面直立的混合运动模式?
还是前面讲过的原因:进化论学者们不懂爬树,不知道树栖和适应地面直立行走,是两种互斥的技能,不能两全。
303.幼儿错4:不懂爬树,臆想直立
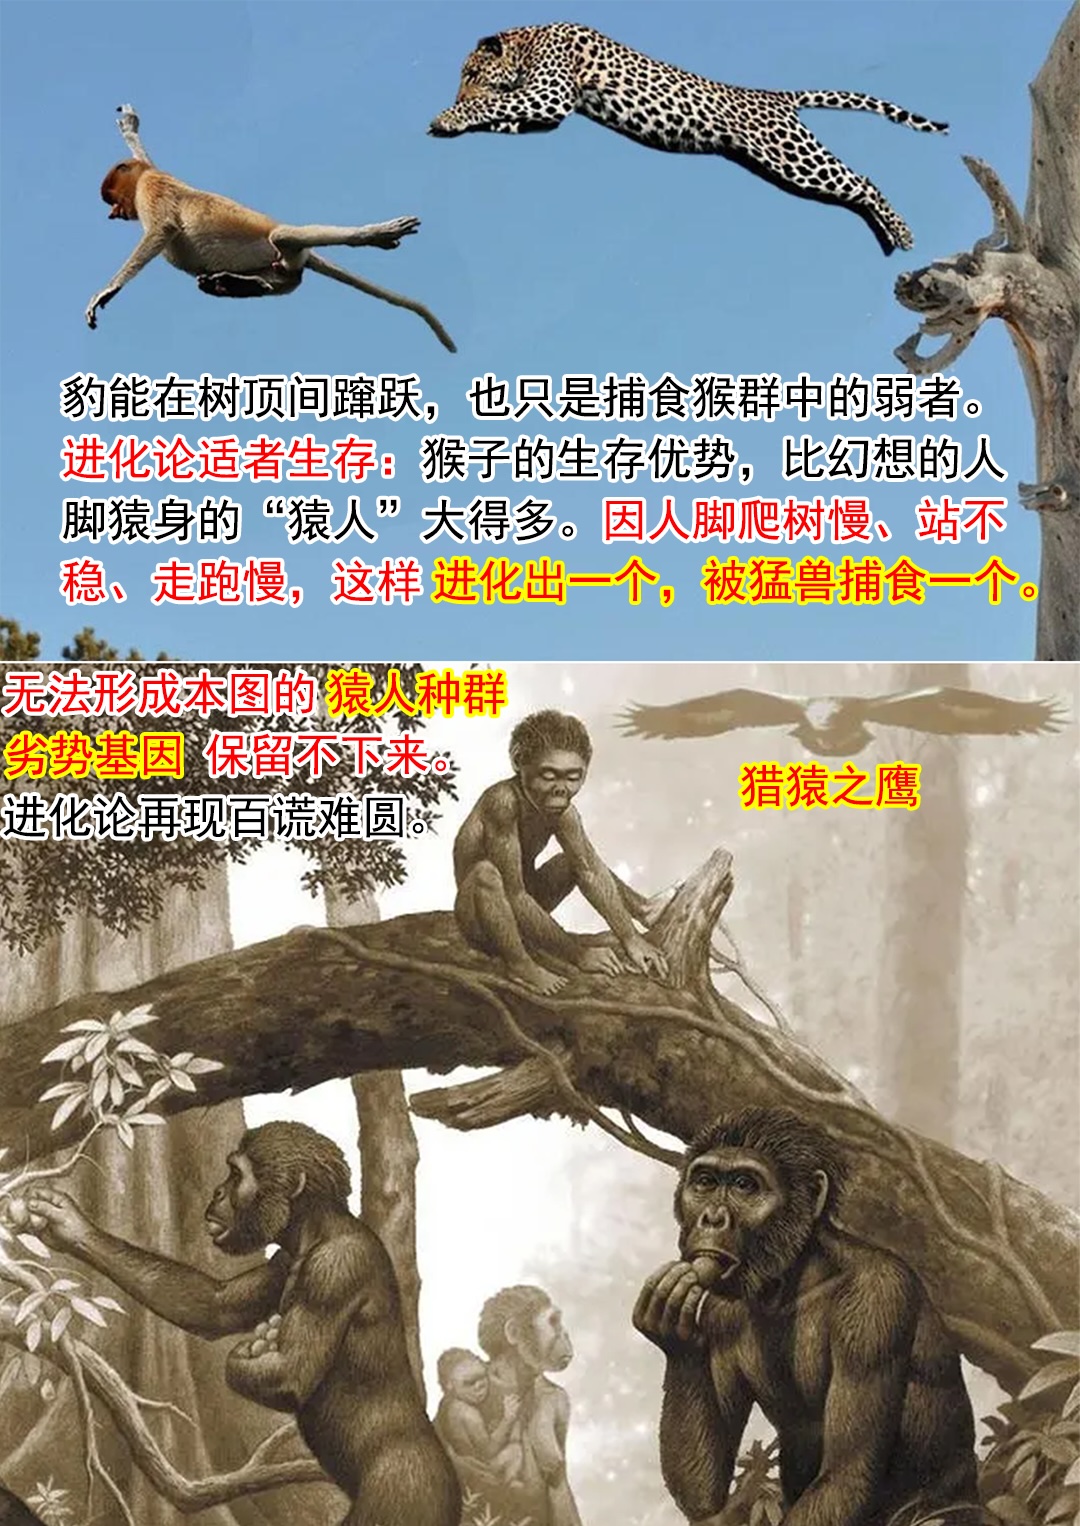
“猿人”种群只是进化论的幻想,失去能爬树的猿脚,就会被猛兽灭绝。(作者提供)
人脚是硬的,爬树太慢,在树上也待不稳当,不适合树栖;猿脚是软的可以抓握,就是来爬树保命的。上面进化论专家幻想的猿人图——种群不会突然出现,总得先进化出来一个吧?可是概率很低的基因突变,“万一进化”出来一个,就得死于猛兽、猛禽之口,因为它爬树比猿慢很多,直立行动更慢,而猛兽总是猎杀最慢的猎物,这样“好不容易进化出”一个,就会被淘汰一个。
这是典型的劣势物种,没有任何生存优势,更没有择偶优势,在激烈的生存竞争中,是自然选择集中淘汰的对象,根本无法把“进化出的基因”保留下来,无法形成种群,怎么进化成人呢?
304.幼儿错5:退回“启动阶段”,直立委婉打脸
“露西幼儿”的残骨结构越研究,发现它越像猿,离“直立行走”越遥远。2018年《科学进展》上的一篇论文委婉地指出:“露西幼儿”(残存)的脚骨结构更像猿,纵向足弓很差很弱,跟人相比是完全的扁平足,只能是双足直立行走的启动阶段[4]。
“启动阶段”和稀泥,却意味深长。现在的黑猩猩、大猩猩也能偶尔蹒跚地直立行走,它们都已经不是启动阶段了,600万年都没把直立行走启动起来,已经是定型阶段了,黑猩猩、大猩猩的身体结构,决定了它们只能那样晃来晃去地双足行走。而“露西幼儿”的“直立启动阶段”,表明它并不比猩猩强到哪儿去,实际是委婉否定了双足直立行走。
305.直立行走的强证据:完全足弓
前几篇讲过直立行走的三个强证据:股骨内斜、碗状骨盆、人脚形状,这里再讲一个强证据:完全足弓。这些强证据只要有一条,就能证明直立行走。
人有完全的足弓,才能完美直立。虽然有无足弓的扁平足患者,也能走能跑,但是动作变形,运动迟缓。
人脚有三条足弓,内侧纵向足弓、外侧纵向足弓、横向足弓。有人没有横弓,只有纵弓,这样并不是扁平足,走路影响不太大;而没有纵弓,横弓就因失去架构的基础而不存在了。所以纵弓最重要,一般说的足弓都是指纵弓。
306.幼儿错6:“足软弯”冒充足弓,伪造直立
猩猩、黑猩猩、大猩猩、长臂猿,这些类人猿都没有纵向足弓,其实连横向足弓也没有。猿的所谓“横向足弓”是近代进化论搞出来的噱头,那实际是足部适应抓树的足骨软弯,笔者这里称为“足软弯”。因为:
1.人足弓是硬骨架结构,所以足弓像拱桥一样撑起体重;
2.人足弓2—3岁才开始发育,14岁才发育成熟定型,幼童足骨软,没完全硬化,所以幼童走路稍微长一点就脚疼,长期这样会造成足弓塌陷。
3.成年猿的足骨也是软的,是可变结构,是可以根据树的粗细,变化“足软弯”的弯曲程度,以抓树攀爬。这样的“足软弯”可不是足弓,撑不起体重。猿是四足行走,后足外侧着地,前足指关节着地,它不需要足弓在地面运动,需要“足软弯”爬树,在树上抓握树枝,所以“足软弯”一生不硬化。
4.古猿的“足软弯”形成化石,当然就硬了。进化论专家或者不懂这些,或者故炒噱头,把“足软弯”炒作成横向足弓,制造向人足进化的假象。
5.“横向足弓”的基本结构,见下图,足跖骨上大下小,像石拱桥一样,挤成拱形结构;而“露西幼儿”化石跖骨椭圆形,没有“上大下小”的结果,也就根本不是横向足弓。
6.猿幼崽足更软,更没有足弓,所以,下面论文中“露西幼儿”的“横向足弓”,不过是进化论骗人的把戏。
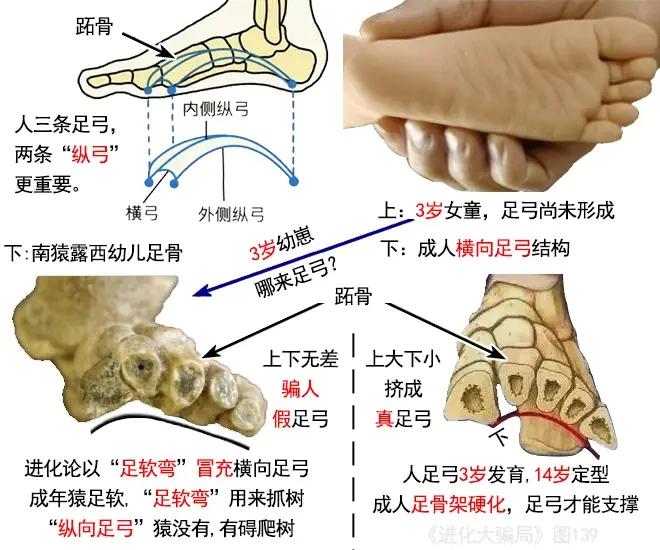
进化论在足弓上不断造假,伪造“露西幼儿”直立,编造人类祖先。(作者提供,图部分参考文献4)
*这样造假的科研论文成果,也登上了世界著名学术的期刊《科学进展》[5]。对比上图,造假之处简明直白。
回顾本文,回首南猿。露西被进化论誉为经典证据、唯一公认的“缺失环节”、直立行走、“人类共同祖母”,前面连续5篇,揭开它38项造假,进化论的中流砥柱彻底坍塌;本文的“露西幼儿”,6项造假彻底曝光了其直立行走的骗局,也给露西再添反证。但是,南猿的造假并没有结束,请看下集《小脚直立,威慑露西》
(未完,待续)
参考文献
1. Zeresenay Alemseged, et al., A juvenile early hominin skeleton from Dikika, Ethiopia, Nature443(7109):296–301,21 September2006
2. Raymond Dart, Australopithecus africanus The Man-Ape of South Africa, Nature,115:195-199,07 Feb1925,
3. Wood, B. A precious little bundle,Nature443,278–279(2006). Doi:10.1038/443278a
4. Jeremy M. DeSilva et al., A nearly complete foot from Dikika, Ethiopia and its implications for the ontogeny and function of Australopithecus afarensis. Sci. Adv.4,eaar7723(2018). Doi:10.1126/sciadv.aar7723
(点阅《进化骗局》系列文章)